环尾狐猴大眼睛适应夜行?揭秘灵长目夜行生存秘技
夜视能力的生理基础:环尾狐猴的视觉进化
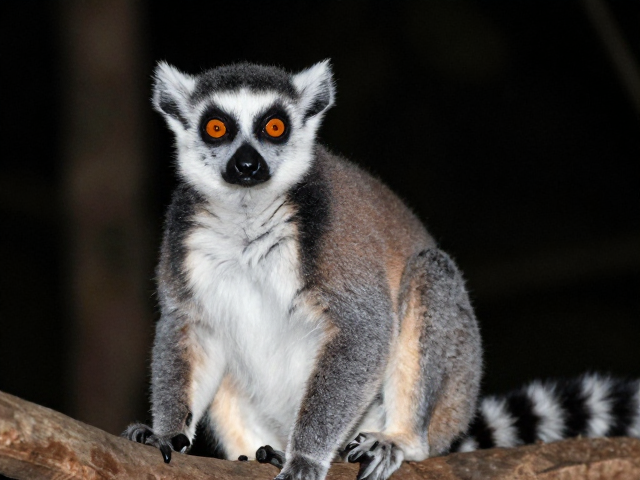
环尾狐猴(学名:Lemur catta)作为现存最典型的日行性灵长类动物,其双眼结构与夜行性物种存在显著差异。尽管它们主要活跃于白天,但在黎明、黄昏等光线昏暗时段,环尾狐猴仍会保持一定的活动能力。这种在低照度环境下的视觉表现,并非像猫或猫头鹰那样具备典型的夜行性适应特征,而是依赖于其视网膜中视锥细胞与视杆细胞的比例配置。灵长目动物普遍拥有高度发达的视锥细胞,负责色彩视觉和高分辨率成像,这使得环尾狐猴在日间能精准识别成熟果实的颜色及同伴的面部表情。然而,在光线不足时,其视杆细胞虽能感知微弱光线,却无法像真正的夜行性动物那样提供清晰的暗视觉图像。
所谓“大眼睛适应夜行”的说法在生物学分类上存在概念混淆。环尾狐猴的眼睛直径约为1.2至1.4厘米,相对于其头骨比例虽不算小,但并未形成类似夜行性动物(如眼镜猴)那种极度扩大的眼球结构以容纳更多的感光细胞。灵长目动物的视觉系统演化路径主要指向日间活动,其视觉皮层对色彩和细节的处理能力远超对暗光敏感度的优化。因此,环尾狐猴在夜间通常处于休息状态,依靠厚实的皮毛和蜷缩的姿态减少热量散失,而非依靠视觉捕猎或导航。其生存策略的核心在于日间的高强度觅食与社交,而非夜间的光线适应。
行为模式与社会结构对光照的依赖
环尾狐猴的社会行为高度依赖于视觉信号,这是其日间生存策略的关键组成部分。在群体生活中,个体间通过复杂的面部表情、肢体语言以及尾巴姿态进行交流,这些非语言沟通方式必须在良好的光照条件下才能被准确识别。例如,环尾狐猴在展示从属地位或求偶意愿时,会做出特定的头部倾斜或快速眨眼动作,这些细微的视觉线索在夜间完全失效。因此,将环尾狐猴视为具有夜行性生存技能的观点,忽略了其社会结构对日间视觉互动的根本性依赖。它们的“大眼睛”更多是为了在日间高对比度环境中提升视觉敏锐度,而非应对夜间黑暗。
在野外观察中,环尾狐猴的活动节律与光照强度呈正相关。清晨日出后,它们会迅速开始觅食活动,利用视觉搜索高能量的果实、花蜜及昆虫。正午时分,强烈的阳光常迫使它们寻找树荫休息,以应对高温。这种对光照周期的严格遵循,进一步印证了其生理结构并未向夜行性方向演化。即便在光线逐渐减弱的傍晚,环尾狐猴也会停止大部分活动,返回树洞或岩石缝隙中过夜。这种行为模式表明,其视觉系统并未进化出应对夜间环境的特异性优势,所谓的“夜行适应”更多是对日行性动物在晨昏时段残余活动能力的误读。
灵长目视觉演化的多样性与误区
灵长目动物在演化过程中形成了多样化的视觉适应策略,涵盖从完全夜行性到完全日行性的广泛谱系。夜行性灵长类(如鼠狐猴)拥有巨大的眼睛和反光的照膜(Tapetum lucidum),能显著增强弱光下的视觉灵敏度,但通常牺牲了色彩视觉和分辨率。相比之下,环尾狐猴代表了旧世界猴与部分新世界猴中向日间视觉优化的分支。将环尾狐猴归入夜行性适应的案例,常源于对其晨昏活动习性的过度解读。实际上,其视觉系统的核心优势在于三色视觉(Trichromacy),即能同时感知红、绿、蓝三种波长的光,这对于在复杂的森林环境中识别不同成熟度的果实至关重要。
现代灵长类学研究通过对比不同物种的视蛋白基因序列,证实了日行性灵长类在演化中丢失了对暗光敏感视蛋白的功能,转而强化了对色彩和细节的分辨能力。环尾狐猴的基因特征支持这一观点,其视觉受体蛋白对可见光谱中的长波长光更为敏感。这种生理机制决定了其在夜间视野中几乎是一片模糊,无法像夜行性动物那样利用光线轮廓进行移动。因此,讨论环尾狐猴的“夜行生存秘技”缺乏生理学依据,其真正的生存优势在于日间高效的视觉搜索能力与社会性协作,而非对黑暗环境的适应。