马达加斯加全境环尾狐猴形态变异特征解析
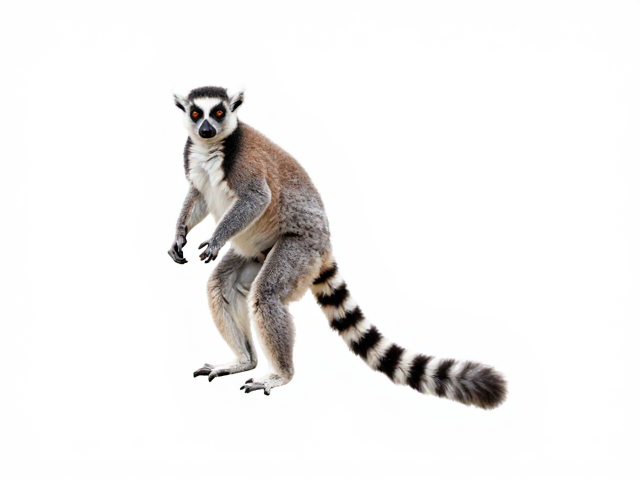
环尾狐猴基础生物学特征与分类地位
环尾狐猴属于灵长目狐猴科环尾狐猴属,是马达加斯加岛最具标志性的灵长类动物之一。其显著特征包括黑白相间的环状尾巴、尖尖的吻部以及相对较大的眼睛,这些形态特征使其在丛林环境中具有极高的辨识度。在马达加斯加的南部干旱灌木林地和岩石地带,环尾狐猴形成了独特的社会结构,通常以10到40只个体为单位组成家族群,这种群居生活方式对其形态特征的表达有着深远的影响。
作为马达加斯加特有的物种,环尾狐猴的形态演变深受当地极端气候条件的塑造。该物种主要分布在马达加斯加南部和西南部,这一区域的地貌以干旱的灌木丛、荆棘林以及石灰岩悬崖为主。为了适应这种干燥且温差变化剧烈的生态环境,环尾狐猴在皮毛厚度、体型大小以及尾部脂肪储存能力上展现出了高度的特化。这种地理隔离和生态位的选择,为后续不同种群间形态变异的产生奠定了基础。
体色变异与地理种群差异
环尾狐猴最引人注目的形态特征莫过于其尾部及背部的黑白条纹图案,然而这一特征在不同地理种群中存在着显著的变异性。研究表明,马达加斯加南部不同地区的环尾狐猴在条纹的宽度、清晰度以及颜色对比度上存在可测量的差异。例如,生活在安卡贝洛基哈(Andohahela)地区的种群,其尾部条纹通常比北部或中部地区的同类更为宽大且对比鲜明。这种体色差异并非随机分布,而是与局部微气候和植被覆盖密度有着密切的相关性。
体色变异的可能机制涉及多种环境因素的选择压力。在光照强烈、开阔度高的地区,黑白相间的条纹可能有助于调节体温或减少强光下的视觉干扰,同时也可能在群体识别和社交信号传递中发挥作用。不同种群间的基因流动受限,导致这些形态特征在局部群体中固定下来,形成了独特的地域性表型。通过长期野外观察和标本比对,研究人员确认了这种体色变异是种群对环境适应的结果,而非单纯的遗传漂变。
体型大小与气候适应机制
在体型方面,环尾狐猴展现出了明显的地理变异趋势,这与伯格曼法则(Bergmann's rule)在灵长类动物中的表现有一定的一致性。伯格曼法则指出,同一种温血动物在较冷地区的个体体型通常较大,以减少相对表面积从而降低热量散失。马达加斯加南部地区的环尾狐猴普遍比北部地区的个体体型更大,体重和身长数据均显示出这一趋势。这种体型差异有助于它们在夜间气温骤降的环境中更好地保存体温。
除了体型大小,肢体比例也存在适应性变异。南部种群的环尾狐猴通常具有更短的四肢和更紧凑的躯干,这种形态特征有助于减少热量散失,同时适应其在岩石间跳跃和攀爬的生活习性。相比之下,北部湿润森林地区的环尾狐猴体型相对较小,肢体较长,这更利于在茂密树冠间灵活移动。这些形态上的细微差别,反映了环尾狐猴在不同生态环境中长期演化过程中形成的生理和行为适应策略。
尾部形态的功能性与变异
环尾狐猴的尾巴长度约占体长的三分之二,是其平衡和社交互动的关键器官。在形态变异的研究中,尾部长度和肌肉发达程度在不同种群中表现出显著差异。南部干旱地区的环尾狐猴尾巴通常更为粗壮,肌肉组织更为发达,这有助于它们在崎岖不平的岩石地形中保持平衡,尤其是在进行长距离跳跃时。尾部的环状图案不仅具有伪装和社交识别的功能,其形态结构的差异也可能影响尾巴在平衡过程中的力学表现。
尾部形态的变异还与群体的社会结构密切相关。环尾狐猴是严格的母系社会,雌性占据主导地位,尾巴在个体间的等级识别和从属关系中扮演着重要角色。研究表明,尾巴末端的毛发密度和颜色深度在不同社会等级的个体中可能存在细微差异,这些形态特征有助于维持群体内部的稳定。此外,尾巴在寒冷夜晚会缠绕在身体周围以保暖,因此尾部脂肪储存能力的差异也影响了其形态特征,南部种群往往具有更厚的尾部皮下脂肪层。
头部形态与感官适应
环尾狐猴的头部形态特征,特别是面部颜色和耳部结构,在不同种群中也存在一定的变异性。面部通常呈黑色,但眼周和耳部的颜色深度在不同地区有所差异。马达加斯加南部种群的环尾狐猴耳部相对较大,这可能有助于在开阔环境中捕捉细微的声音,以便及时发现捕食者或寻找食物。此外,吻部的长度和形状在不同个体间存在轻微变异,这种变异可能与食性偏好有关,尽管环尾狐猴主要以昆虫、果实和花蜜为食,但局部资源分布可能导致咀嚼肌和颌骨形态的适应性调整。
头骨形态的研究揭示了环尾狐猴在进化过程中的适应性变化。通过比较不同地区环尾狐猴的头骨化石和现存个体,科学家发现其颧弓宽度和牙齿磨损模式在不同种群中有所差异。南部种群的头骨通常更为坚固,牙齿磨损痕迹显示出其可能摄食更多坚硬或纤维性较高的植物材料。这种形态上的适应性调整,反映了环尾狐猴在面对食物资源波动时,通过改变咀嚼结构和面部肌肉分布来优化取食效率的生物学策略。