农业扩张与栖息地破坏,如何遏制近亲繁殖致基因多样性丧失
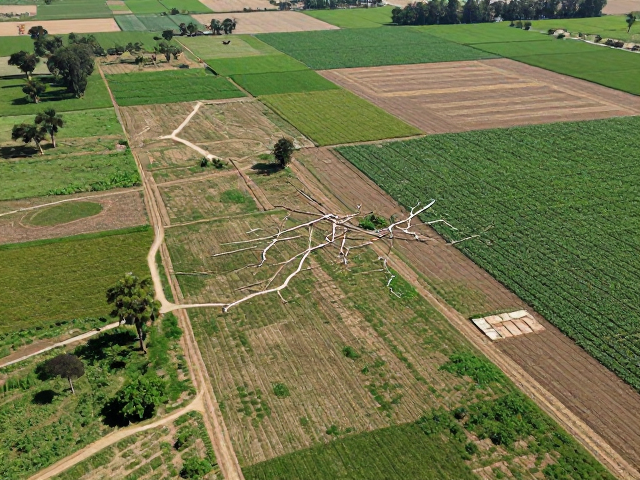
农业版图的无序蔓延与生态基质的破碎化
全球耕地面积在过去半个世纪中呈现显著扩张趋势,直接挤压了野生动植物的生存空间。根据联合国粮食及农业组织(FAO)的数据,过去几十年间,大量天然林、湿地和草原被转化为单一作物种植区或牧场。这种土地利用方式的根本性转变,使得原本连续且复杂的自然景观被切割成孤立的“生态孤岛”。对于许多野生种群而言,栖息地的丧失并非简单的面积减少,更是连通性的断裂。道路、农田和人工设施构成了物理屏障,阻断了动物个体的迁徙路线和植物花粉的风媒传播路径,导致不同种群间的基因交流逐渐停滞。
栖息地破碎化引发的直接后果是种群规模的急剧萎缩和隔离。当一个大型连续种群被分割为多个小型亚种群后,每个亚种群内部可供交配的个体数量大幅降低。以两栖动物为例,许多蛙类种群因栖息地中的池塘被填平或隔离,导致不同水域的种群之间无法进行基因置换。长期处于这种封闭状态下,个体只能选择在近缘亲属之间寻找配偶,从而不可避免地加剧了近亲繁殖的现象。这种生物学层面的隔离,使得种群逐渐丧失应对环境变化和疾病侵袭的遗传缓冲能力,为后续的多样性衰退埋下隐患。
近亲繁殖的遗传机制与多样性流失陷阱
近亲繁殖会显著增加隐性有害等位基因纯合的概率,导致“近交衰退”现象。在遗传学层面,当亲缘关系较近的个体进行交配时,后代获得相同基因拷贝的可能性大幅上升。这不仅表现为出生率下降、幼崽存活率降低、畸形率升高等表型特征,更深层的影响在于种群有效种群大小(Ne)的缩小。有效种群大小是指在实际繁殖中贡献基因的个体数量,它通常远小于实际种群数量。当有效种群大小过低时,遗传漂变的效应增强,大量中性甚至有益的基因变异会在随机过程中丢失,导致整体基因库的贫乏。
基因多样性的丧失使得种群进化潜力受到严重制约。在面临气候变化、新型病原体或环境毒素时,缺乏遗传变异的种群难以通过自然选择产生适应性进化。例如,某些受困于孤立栖息地的植物种群,因缺乏抗病基因变异,一旦遭遇特定真菌感染,可能面临整片种群灭绝的风险。这种遗传上的脆弱性使得生态系统变得更加不稳定。研究表明,在高度破碎化的景观中,某些哺乳动物和鸟类的杂合度显著低于连续栖息地中的同种个体,这种差异在短短几十年内即可观察到,且难以通过自然扩散迅速恢复。
生态廊道建设与栖息地连通性修复
遏制近亲繁殖的核心策略在于重建栖息地之间的物理与功能连通性,其中生态廊道是最有效的干预手段。生态廊道是指连接两个或多个孤立栖息地的景观区域,允许生物在其中移动、觅偶和交换基因。在规划时,需基于物种的行为特征和扩散能力,精准定位关键连接点。例如,在林业管理中,保留林间原有的植被带,或在农田与森林交界处设置缓冲林带,能够为小型哺乳动物和昆虫提供安全的迁徙通道。这种“绿色通道”的设计需要结合遥感技术和长期种群监测数据,确保廊道的宽度和植被结构能满足目标物种的需求。
除了线性廊道,景观尺度的基质改善同样至关重要。单一作物种植形成的“绿色沙漠”对野生动物极具排斥性,而通过在农业景观中引入多样化的植被结构,如保留田间杂草带、种植蜜源植物或保留非耕作期的覆盖作物,可以提升景观的整体适宜性。这种半自然基质能够降低迁徙过程中的能量消耗和捕食风险,促进不同斑块间个体的偶然接触。国际自然保护联盟(IUCN)在多个案例中指出,通过优化农业景观结构,即使不大规模恢复原始栖息地,也能显著提升局部种群的基因流动效率,缓解因隔离导致的遗传退化。
辅助迁移与人工遗传管理干预
当自然扩散完全受阻且种群遗传多样性已处于极低水平时,人工辅助迁移成为一种必要的补救措施。这一技术涉及将个体从一个种群迁移至另一个近缘但遗传隔离的种群中,以引入新的等位基因。实施过程需极其谨慎,必须通过严密的基因组分析确定供体和受体种群间的遗传距离,避免不同亚种或生态型之间的杂交导致的“杂交污染”或适应性丧失。例如,在北美某些濒危两栖类保护项目中,科学家通过微卫星标记和SNP(单核苷酸多态性)分析,识别出国内遗传结构高度相似的孤立种群,随后进行受控的个体交换,成功提升了后代的健康指数和遗传变异水平。
人工遗传管理还包括建立严密的谱系记录和圈养繁殖计划,用于野化放归前的遗传优化。对于野外种群已无法维持最小可存活数量(MVP)的情况,保护机构需利用圈养种群作为遗传资源库。通过计算基因代表值(GV),优先保留那些携带稀有等位基因的个体进行繁殖,最大化保留整体遗传多样性。随后,经过遗传评估和适应性训练的个体被定期放归野外,替代因近亲繁殖导致繁殖能力下降的个体。这种基于数据的精准干预,能够有效打断近亲繁殖的恶性循环,为濒危物种的长期生存提供遗传支撑。