生物冷知识,拥有对生拇指与角质坐板的奇特动物解析
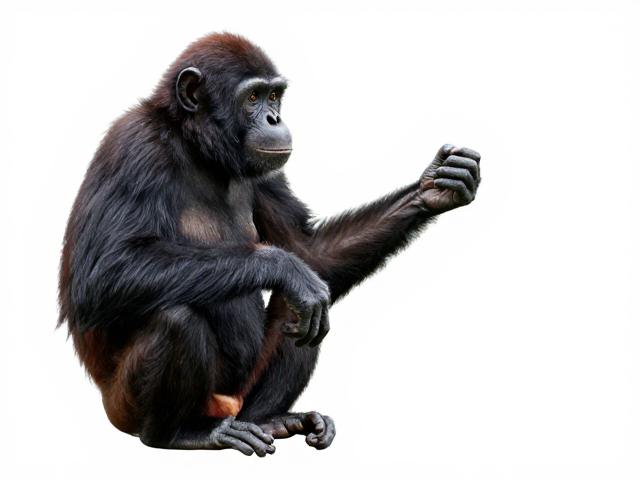
灵长类中的独苗:人类与类人猿的并指结构
在生物进化的版图中,大多数哺乳动物的手指呈现为平行排列的圆柱状,缺乏能够与其他手指对合的能力。然而,人类以及部分灵长类动物(如黑猩猩、大猩猩和红毛猩猩)却拥有独特的“对生拇指”结构。这种解剖学特征表现为拇指根部拥有特殊的鞍状关节,使得拇指能够像钳子一样跨越手掌,与其他四指形成严密的对合。这一结构并非简单的生理巧合,而是数百万年自然选择的结果,它极大地提升了抓握的灵活性与力量控制,成为人类制造工具、进行精细操作的核心生理基础。
与灵长类动物灵活的肌肉组织不同,鸟类中的鸬鹚科动物则通过一套严密的角质系统实现了类似的功能性闭合。鸬鹚的跗跖骨(俗称“小腿”部分)与脚趾连接处覆盖着坚硬的角质鳞片,这些鳞片在生理上被称为“角质坐板”或角质鳞甲。当鸬鹚潜水捕鱼时,这套结构不仅保护了足部免受尖锐鱼刺的伤害,更关键的是,其脚趾能够像夹子一样紧密闭合,牢牢锁住滑溜的猎物。这种生物构造与灵长类对生拇指在功能逻辑上有着惊人的同源性,即通过不同材质的生物组织(肌肉骨骼 vs 角质蛋白)实现对物体的强制性固定。
角质结构的生物力学与生存策略
鸬鹚的角质坐板由角蛋白构成,这是一种与人类指甲、头发成分相同的坚韧蛋白质。在潜水过程中,鸬鹚的双足并拢,角质鳞片相互咬合,形成一个封闭的夹持空间。这种设计极大地减少了猎物逃脱的概率,特别是在捕捉高价值的大型鱼类时,角质结构的耐磨性和强度成为了生存的关键。研究表明,鸬鹚脚趾的角质层厚度会随着捕食频率和环境压力发生微弱的适应性变化,这种生物可塑性确保了其在不同水域环境中都能保持高效的捕食能力。
相比之下,灵长类动物的对生拇指依赖于复杂的神经肌肉控制。拇指内侧的肌腱和韧带系统允许其在极小的空间内进行多轴旋转。这种灵活性使得灵长类动物不仅能完成抓握动作,还能进行精确的触觉反馈。当指尖接触物体时,高密度的神经末梢能将物体的质地、温度和形状信息迅速传输至大脑皮层。这种生物力学机制的对生结构,使得灵长类动物在树栖生活中能够应对复杂多变的树枝环境,也为后来人类使用工具奠定了生理基础。
跨物种的功能趋同与演化差异
尽管鸬鹚的角质坐板和灵长类的对生拇指在外观和材质上截然不同,但它们都体现了生物演化中的“趋同演化”现象。即不同物种在面对相似的生存压力(如获取食物、固定物体)时,独立演化出了功能相似的结构。鸬鹚通过外骨骼式的角质强化来解决“抓不住”的问题,而灵长类通过内骨骼式的关节重构来解决“抓不紧”的问题。这种差异反映了水生捕食者与树栖觅食者在生理结构上的根本分野:前者需要抵抗水的阻力和猎物的挣扎,后者需要适应三维空间的复杂移动。
在具体的行为表现上,这两种结构带来的生存优势也体现在不同的生态位中。鸬鹚利用角质坐板进行一次性高强度抓握,通常在水中完成捕食,随后浮出水面吞咽。这种策略减少了在水下与猎物缠斗的时间,降低了能耗。而灵长类动物利用对生拇指可以进行长时间、多阶段的操作,如剥皮、敲击、编织等。这种持久性操作能力使得灵长类动物能够利用外部物体改变环境,从而拓展生存边界。从生物冷知识的角度来看,这种结构上的细微差别,直接决定了了物种在生态系统中的从属地位与行为模式。
解剖学细节与生理机制解析
鸬鹚脚趾的角质鳞片排列具有严密的几何规律,鳞片边缘呈锯齿状,增加了摩擦力。在显微镜观察下,这些角质层的微观结构呈现出交错的纤维状排列,这种结构极大地增强了材料的抗撕裂能力。当鸬鹚闭合脚趾时,锯齿状边缘相互嵌合,形成类似魔术贴的锁定效果。这种物理锁定机制不需要消耗大量肌肉能量,使得鸬鹚可以在长时间潜水后依然保持足部的抓握力。此外,角质层下方丰富的血管网络有助于调节足部温度,防止低温环境下组织冻伤。
灵长类对生拇指的解剖核心在于第一腕掌关节(CMC关节)。该关节呈鞍状,允许拇指进行屈曲、伸展、内收、外展以及对掌运动。其中,对掌运动是拇指尖端接触其他手指尖端的动作,这是灵长类动物独有的能力。控制这一动作的肌肉主要包括拇短展肌、拇对掌肌和拇短屈肌。这些肌肉的发达程度在不同物种中有所差异,例如,黑猩猩的拇指相对较短,对掌能力略逊于人类,但仍能完成基本的工具使用。这种肌肉分布的细微差别,直接影响了不同灵长类物种在工具使用复杂度上的表现。