猛犸象亚种对比图鉴,快速判断指南与等级制度全解析
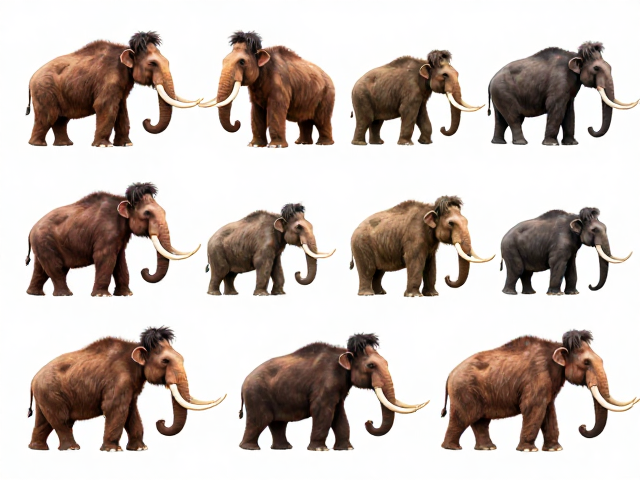
猛犸象亚种的演化脉络与地理分布特征
猛犸象并非单一物种,而是适应冰期不同生态环境的多个演化支系,主要可分为真猛犸象(Mammuthus primigenius)、哥伦比亚猛犸象(Mammuthus columi)以及更早期的真猛犸象祖先类型。真猛甲象是分布最广、研究最详尽的亚种,其化石记录横跨欧亚大陆北部至北美大陆,生存年代主要集中于晚更新世。这一亚种演化出了极其厚密的毛皮和显著的脂肪层,以适应西伯利亚及北美高纬度地区的极寒气候,其牙齿珐琅质脊纹密集,专门用于研磨坚韧的冰原植被。
哥伦比亚猛犸象则代表了猛犸象向温暖气候适应的演化分支,主要分布于北美西部及南部地区。相较于真猛犸象,哥伦比亚猛犸象体型更为庞大,肩高可达4.5米以上,体重估计超过10吨,其牙齿脊纹较稀疏,表明其食谱中包含更多树叶及灌木,而非纯粹的草本植物。这种形态差异反映了它们在混合林地与开阔草原环境下的生存策略,是猛犸象多样性研究中的重要环节,也是区分不同亚种的关键解剖学依据。
关键解剖特征与快速鉴别指南
在野外或博物馆观察猛犸象化石时,判断亚种最直观的依据在于牙齿形态与体型比例。真猛犸象的臼齿具有高耸的齿脊,齿脊之间排列紧密,数量通常超过20条,这种结构能像锉刀一样有效处理粗糙的冰草。相比之下,哥伦比亚猛犸象的臼齿齿脊较低且间距较宽,数量通常在15到20条之间,这种“低脊宽距”的结构更适应咀嚼较软的树叶和嫩枝。通过观察化石下颌骨上的牙齿磨损模式,古生物学家可以重建其饮食习惯及生存环境的植被类型。
体型与骨骼结构是另一项核心鉴别指标。真猛犸象具有圆顶状的头颅和相对较小的耳朵,这种低表面积的身体形态有助于减少热量散失,符合伯格曼法则在寒冷地区的表现。其肩高通常在2.5至3.0米之间,四肢短粗,脚掌宽大,适合在雪地行走。哥伦比亚猛犸象则拥有更平坦的头顶和更大的耳朵,虽然耳朵依然比现代亚洲象小,但比真猛犸象的耳朵要大,这有助于在较温暖的气候中调节体温。此外,哥伦比亚猛犸象的股骨通常更长,显示出其可能具有更快的奔跑速度以适应开阔地带的迁徙。
生存年代与环境适应性差异
真猛犸象的繁荣期与末次冰期的扩张与退缩紧密相关,其化石层位常出现在泥炭层、冻土带及河流沉积物中,年代跨度从约300万年前延续至约4000年前。在弗兰格尔岛等孤立区域,真猛犸象甚至存活到了公元前2000年左右,远晚于大陆种群。这种长期的生存得益于其对极端寒冷、干燥气候的卓越适应能力,以及群居社会结构带来的防御优势。其生存环境的变迁直接影响了种群的遗传多样性,导致其在面对气候转暖时缺乏足够的适应性变异。
哥伦比亚猛犸象的活跃期主要集中在晚更新世的中后期,约在150万至1万年前之间。随着冰盖的消退,北美大陆气候逐渐变暖,哥伦比亚猛犸象向南部和西部退缩,最终在与真猛犸象的接触区发生杂交或替代。其灭绝时间相对较早,主要驱动力来自气候变暖导致的植被类型改变以及人类狩猎压力的增加。化石记录显示,哥伦比亚猛犸象的遗骸常发现于石灰岩洞穴或干涸的湖床,这些地点保存了大量骨骼与软组织信息,为研究其生态习性提供了宝贵资料。
亚种间的杂交与遗传联系
现代古基因组学技术的发展揭示了猛犸象不同亚种间存在复杂的杂交事件。在西伯利亚及北美部分地区发现的化石样本中,科学家检测出真猛犸象与哥伦比亚猛犸象的混合基因特征。这种杂交发生在两个亚种分布区重叠的地带,表明它们在生态位允许的情况下能够进行基因交流。杂交后代可能兼具真猛犸象的耐寒特征与哥伦比亚猛犸象的庞大体型优势,这种遗传混合丰富了猛犸象的演化历史,也解释了某些化石个体在形态上表现出的中间代谢特征。
遗传分析还表明,猛犸象的不同种群在面临环境压力时,会通过基因流动来维持种群的生存能力。然而,随着冰期结束,栖息地破碎化加剧,种群间的基因交流逐渐中断。真猛犸象种群在隔离状态下积累了有害突变,导致遗传多样性下降,而哥伦比亚猛犸象则因栖息地缩小和竞争加剧而走向灭绝。这些遗传证据支持了猛犸象亚种分化是环境选择与地理隔离共同作用的结果,为理解大型哺乳动物的演化动力学提供了重要案例。