环尾狐猴与大狐猴区别,原猴亚目动物特征全解析
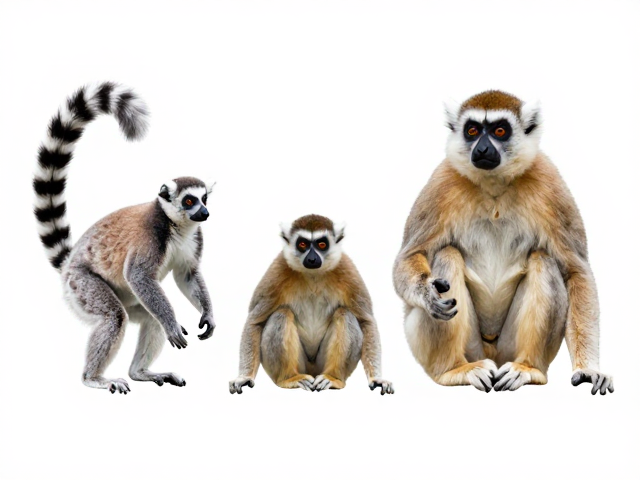
灵长类起源的原猴亚目基础特征
原猴亚目(Strepsirrhini)是灵长目中较为原始的一个分支,其演化历史可追溯至距今约6000万至6500万年前的古新世晚期。这一类动物保留了大量早期哺乳动物的解剖学特征,最显著的区别在于它们拥有湿润的鼻端和发达的犁鼻器,这使得它们高度依赖嗅觉进行环境感知与社会交流,这与依赖视觉为主的类人猿亚目形成了鲜明对比。
在生理结构上,原猴亚目动物普遍存在“齿梳”这一标志性特征,即下前牙及第一前臼齿特化为向前倾斜的梳状结构,主要用于梳理毛发以维持皮毛清洁和寄生虫防护。此外,许多原猴类动物具有反光膜(Tapetum lucidum),这是一种位于视网膜后方的反射层,能增强夜间视力,使其中的夜行性物种能在低光照环境下有效活动,这也是适应森林底层复杂光照环境的重要进化结果。
环尾狐猴的生态习性与形态识别
环尾狐猴(学名:Propithecus circinatus,现分类学多归入 Varecia 属,如黑白领狐猴 Varecia variegata 常被误称为环尾狐猴,此处指代马达加斯加特有的狐猴科动物)是马达加斯加岛特有的灵长类,主要栖息于该岛的东部雨林中。它们以树栖生活为主,具有极长的尾巴,尾长通常超过体长,尾部带有明显的黑白相间环纹,这种环纹不仅有助于个体间的视觉识别,还能在群体移动时作为信号引导,防止成员在茂密树冠中失散。
环尾狐猴的社会结构通常由多只雌性主导,群体大小可从几只到二十几只不等。它们具有独特的“晒太阳”行为,常在清晨集体坐在树枝上,背部朝向太阳,双臂展开,这种姿态有助于在凉爽的早晨快速提升体温,维持新陈代谢效率。其饮食结构主要为水果、树叶和花蕾,会根据季节变化调整食物来源,这种灵活性使其能在资源波动较大的雨林环境中生存。
大狐猴的体型优势与行为模式
大狐猴(学名:Indri indri)是现存体型最大的狐猴,也是马达加斯加特有的物种,主要分布在该国东部的潮湿森林中。成年大狐猴体重通常在5.5至10公斤之间,体长约60至90厘米,尾短如兔尾,几乎不可见。这种巨大的体型使它们在狐猴家族中占据独特的生态位,其骨骼结构粗壮,肩部和髋部肌肉发达,适应于垂直攀爬和长距离跳跃,能够在树冠层间进行高达10米以上的跳跃移动。
大狐猴以其复杂的鸣叫系统闻名,尤其是清晨和傍晚时分的合唱行为。这些叫声会持续数分钟,由雄性、雌性和幼崽共同发出,具有严密的和声结构,主要功能是标记领地边界和强化配偶间的情感联系。由于大狐猴的移动速度相对缓慢且依赖视觉信号较少,它们的高度社会性和听觉交流系统对于维持群体凝聚力至关重要,这也是原猴亚目中极为罕见的高级社会行为表现。
分类学差异与演化联系
在生物分类学上,环尾狐猴属于狐猴科(Lemuridae),而大狐猴属于大狐猴科(Indriidae),两者虽同属原猴亚目下的狐猴下目(Lemuriformes),但在演化树上有着明确的分支差异。狐猴科动物通常保留了较长的尾巴以辅助平衡,且吻部较短,牙齿结构相对简化;相比之下,大狐猴科动物在演化过程中失去了功能性尾巴,牙齿结构中保留了更原始的臼齿形态,用于研磨高纤维植物材料,这反映了两者在食性和运动方式上的适应性分化。
尽管存在形态和行为上的显著差异,两者均保留了原猴亚目的核心遗传特征。分子生物学研究表明,马达加斯加的狐猴类动物大约在5000万至6000万年前通过浮木漂流等方式从非洲大陆抵达,随后在孤立的岛屿环境中发生了快速的适应性辐射。这种地理隔离导致了环尾狐猴与大狐猴在生理机能、繁殖策略及社会结构上的多样性,但两者在基因序列中仍能找到共同的祖先印记,证实了它们作为同一大类群近亲的关系。