坐板角质化与五指对生拇指,体型参数解析灵长类抓握力进化
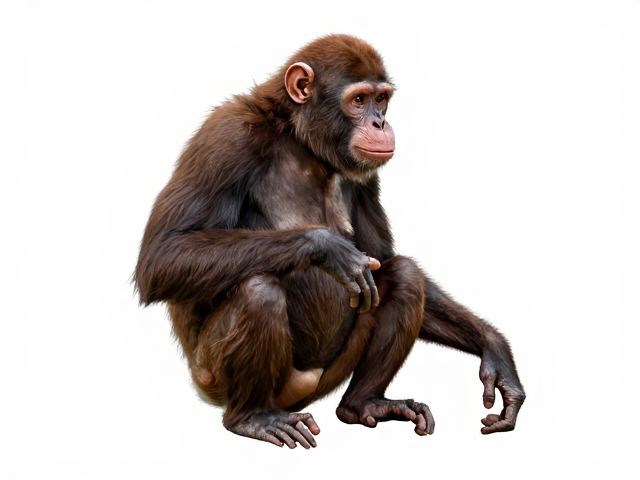
坐板角质化:灵长类树栖生活的力学适应
坐板角质化是灵长类动物下肢足底特有的解剖学特征,主要分布在猕猴、狒狒等旧世界猴及部分猿类中。这一区域由致密的结缔组织和厚实的角质层构成,位于跖骨远端,承担着支撑身体重量及缓冲地面反作用力的关键功能。在树栖环境中,当灵长类动物长时间静止坐立于树枝时,坐板提供了必要的耐磨性与稳定性,防止软组织因持续压迫而受损或感染。这种结构并非在所有灵长类中均等存在,其发达程度通常与物种的树栖生活方式紧密相关,地面活动频繁的物种该区域角质化程度相对较弱。
从生物力学角度来看,坐板的存在改变了足底压力分布的模式。当动物坐下时,坐板区域承受了最大的垂直压力,其厚实的角质层像垫片一样分散了应力,保护了下方的骨骼和神经血管。这种适应性进化使得灵长类能够在狭窄且不规则的树枝上保持平衡,尤其是在需要长时间观察周围环境或休息时。坐板的形态特征,如厚度、硬度及面积大小,直接影响了动物的运动效率和栖息地选择,是研究灵长类生态适应性的重要形态指标。
五指对生拇指:抓握结构的形态基础
五指对生拇指是灵长类手部进化的核心特征之一,表现为拇指能与其他四指相对运动,形成严密的对握功能。这种结构极大地增强了手部的灵活性和操作能力,使灵长类能够精准地抓取树枝、果实或进行复杂的工具使用。在进化过程中,拇指的缩短和旋转使得手掌能够形成一个功能性更强的曲面,从而适应不同直径和形状的物体。这一形态特征在人类及类人猿中表现得尤为显著,是区分灵长类与其他哺乳动物的重要解剖学标志。
拇指的对生能力依赖于腕关节、掌指关节及指间关节的复杂协同作用。第一掌骨的短粗以及拇长伸肌、拇短伸肌和拇收肌的精密排列,提供了强大的抓握力量和精细的运动控制。在树栖生活中,这种抓握结构不仅用于攀爬,还用于在树枝间悬挂和移动身体。随着物种向更复杂的社会行为和认知能力发展,拇指的对生功能逐渐从单纯的物理抓握扩展到精细的操作活动,为后续的工具制造和使用奠定了坚实的生理基础。
体型参数与抓握力的生物力学联系
灵长类的体型参数,如体重、肢体长度及肌肉横截面积,与抓握力存在严密的生物力学关联。根据肌肉生理学原理,肌肉的最大发力能力大致与其生理横截面积成正比。因此,拥有粗壮前臂和较大手掌的灵长类物种,通常具备更强的静态抓握力。然而,抓握力并非仅由肌肉力量决定,骨骼杠杆系统的效率同样至关重要。拇指与其他手指的长度比例、掌骨的长度以及关节的受力角度,共同决定了抓握力的传递效率。
数据分析显示,在同等体重下,树栖灵长类的抓握力通常高于地栖物种。这是因为树栖环境要求更高的抓握稳定性以应对树枝的晃动和滑脱风险。例如,猕猴的抓握力与其前臂肌肉量呈正相关,但其抓握效率更依赖于手指与树枝接触面的摩擦力系数,这与坐板角质化的粗糙程度密切相关。通过测量不同灵长类物种的肢体尺寸和抓握力数据,研究人员能够构建更精确的进化模型,解析体型变化如何驱动抓握功能的特化。
进化轨迹中的功能整合与分化
坐板角质化与五指对生拇指在灵长类进化史上呈现出功能整合与分化的趋势。早期灵长类动物在从树栖向地栖过渡的过程中,坐板角质化程度普遍减弱,而拇指的对生能力在某些物种中进一步特化,以适应更复杂的环境需求。这种分化反映了不同生态环境对身体结构的筛选压力。树栖物种保留了较强的坐板结构和灵活的拇指,以应对三维空间中的移动挑战;而地栖物种则可能在坐板结构上退化,但在拇指的灵活性上可能因工具使用需求而产生新的适应。
现代灵长类研究中,通过比较基因组学和解剖学数据,科学家发现控制拇指发育和角质层形成的基因通路在不同物种中存在显著差异。这些分子机制的变异导致了形态上的多样性,进而影响了物种的抓握能力和生态位。例如,人类虽然失去了典型的坐板结构,但拇指的对生能力达到了极致,使得手部的精细操作能力远超其他灵长类。这种进化路径的变化,揭示了灵长类在适应不同生存策略时,身体结构如何通过权衡与调整,实现功能的最优化。