山林生态调节,植物群落结构如何影响病虫害自然控制与种群平衡
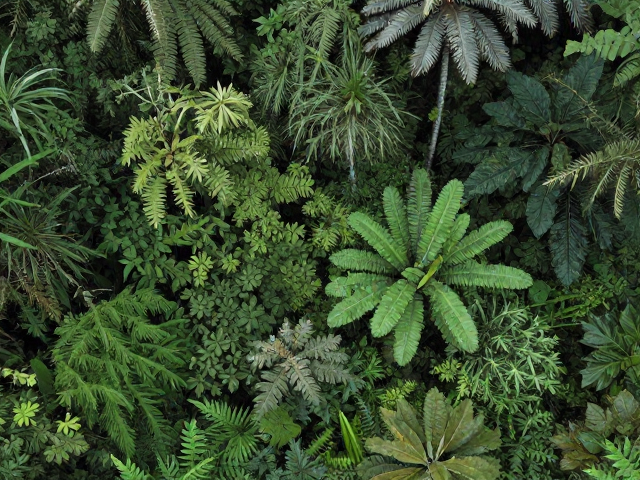
复杂植被结构构建物理与生化防御屏障
森林生态系统中,植物群落的垂直分层与水平异质性构成了病虫害自然控制的第一道防线。乔木层、灌木层与草本层的交错分布,不仅改变了林内的微气候,如光照强度、空气湿度和风速,还为天敌昆虫提供了多样化的栖息环境。例如,在混交林中,不同树种叶片形态和挥发物性质的差异,能够干扰害虫对寄主植物的定位,降低其取食效率。这种物理结构的复杂性使得单一害虫难以形成爆发性种群,从而维持生态系统的稳定性。
植物间的生化相互作用也是调节种群平衡的关键机制。某些深根性树种能够通过根系分泌特定的次生代谢产物,抑制周围土壤中路径依赖型病原菌的活性,或吸引捕食性线虫控制地下害虫。同时,多样性较高的植物群落能诱导产生广谱抗性反应,当个别植株遭受侵害时,邻近的健康植株通过化学信号预警,提前合成防御蛋白或毒素,显著削弱病原菌或害虫的侵染成功率。这种基于化学通讯的群体防御机制,有效遏制了病虫害在群落内的快速蔓延。
天敌功能群依赖生境异质性实现动态调控
天敌昆虫与捕食性动物的种群动态与植物群落结构存在着严密的耦合关系。多样化的植被结构为蜘蛛、捕食性蝽、寄生蜂等关键天敌提供了充足的越冬场所、替代猎物及补充食物源(如花蜜、花粉)。在结构复杂的林分中,天敌的种群密度通常高于单一树种人工林,其捕食或寄生压力能有效压制害虫种群的增长潜力。例如,在拥有丰富中层灌木层的生态林中,瓢虫和草蛉等广谱性捕食者的丰度显著提升,对蚜虫、叶蝉等刺吸式口器害虫保持着持续的自然压制。
生态位互补性促进了天敌群落的功能稳定性。不同天敌物种在活动时间、猎食偏好和栖息微域上存在差异,植物群落的多样性支持了更完整的天敌食物网。当某一种害虫种群出现波动时,其他天敌物种可通过功能冗余填补控制真空,防止害虫完全失控。这种基于群落多样性的缓冲机制,使得生态系统在面对环境扰动或外来物种入侵时,仍能通过内部调节机制维持病虫害种群的低水平平衡,而非依赖外部人为干预。
群落多样性削弱病虫害传播效率与适应性
单一种植模式往往导致害虫种群呈指数级增长,而高多样性的植物群落通过“稀释效应”降低了病原体和害虫的传播效率。在混交林中,非寄主植物像物理屏障一样阻断了专化性病原菌孢子或害虫个体的扩散路径,减少了不同寄主间的接触频率。研究表明,在树种多样性较高的生态系统中,树木间病原菌传播所需的时间显著延长,这为树木自身的免疫反应争取了宝贵窗口期,从而降低了整体发病率。
植物群落的遗传与物种多样性限制了害虫的进化适应性。当害虫面对多种具有不同防御机制的植物时,其适应性突变难以在所有寄主上同时发挥作用,导致种群整体适合度下降。这种多样性压力迫使害虫种群维持较低的遗传特异性,难以形成针对单一防御策略的优势基因型。因此,复杂的植物群落结构通过增加害虫的适应成本,从进化长期维度上抑制了病虫害的爆发风险,维持了森林生态系统的长期健康与平衡。