灵长类进化研究,耳廓可转动与体型大小的关联解析
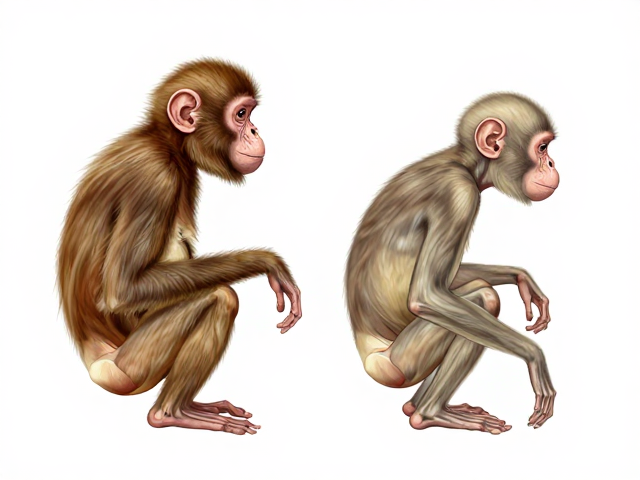
耳廓形态与灵长类听觉适应性的演化联系
灵长类动物在漫长的演化历程中,听觉器官的形态发生了显著的分化,其中耳廓的可动性是一项关键的适应性特征。相较于大多数哺乳动物,人类耳廓肌肉退化导致其固定且无法自主转动,而许多非人灵长类,如狐猴、部分猴类以及类人猿,仍保留着重叠且可大幅转动的耳廓结构。这种生理差异并非偶然,而是与物种所处的生态环境、捕食压力以及社交需求密切相关。可转动的耳廓像是一对高灵敏度的声学雷达,能够独立调整接收声音的角度,从而在复杂的丛林环境中精确定位声源,这对于躲避天敌或寻找食物至关重要。
体型大小在这一演化过程中扮演着基础性角色。小型灵长类动物通常面临更高的捕食风险,其生存策略高度依赖于对环境中细微声响的即时反应。较大的耳廓表面积有助于收集更多的声波能量,提高对低频声音的敏感度。与此同时,耳廓的可动性使得这些动物能够在不移动身体主体的情况下,快速扫描周围环境的声学信号。这种机制降低了因身体暴露行踪而带来的风险,是自然选择在听觉感知领域留下的深刻印记。
体型限制与耳部运动机制的生物力学分析
生物力学原理揭示了体型与耳部运动之间存在的物理约束。小型灵长类动物的耳廓软骨结构相对柔软,附着其上的耳部肌肉群(如耳前肌、耳上肌和耳后肌)能够产生足够的扭矩驱动耳廓进行大角度旋转。这种运动范围通常可达180度甚至更多,使得动物能像卫星天线一样追踪移动的声音源。相比之下,大型灵长类动物,尤其是类人猿,随着体型的增大,头部重量增加,耳廓的软骨结构变得更加厚实且刚性增强,以支撑其形态。这种结构变化虽然提高了耳部的稳定性,却极大地限制了肌肉驱动耳廓转动的效率与幅度。
数据显示,耳廓转动所需的力量与耳廓的面积及头部质量呈正相关。大型灵长类动物的耳廓相对头部比例较小,且缺乏像小型灵长类那样发达的耳部浅表肌肉层。这导致它们无法像小型物种那样灵活地调整听觉方向。此外,大型动物的听觉更多依赖于耳蜗对声音频率的解析能力,而非耳廓对声源的物理指向。这种从“指向性接收”向“高解析度接收”的转变,反映了不同体型灵长类在听觉策略上的根本分歧,即小型物种侧重空间定位,大型物种侧重频谱分析。
社交行为对耳部功能演化的潜在影响
除了生存压力,社交互动的复杂性也在一定程度上塑造了灵长类耳廓的演化路径。许多小型灵长类动物具有高度社会化的群居生活,个体间需要频繁通过声音进行联络、警告或求偶。可转动的耳廓使得个体能够在群体活动中,独立聚焦于某个特定的声音信号,屏蔽背景噪音。这种能力增强了群体内部的沟通效率,有助于维持紧密的社会纽带。例如,在狐猴科中,个体常通过复杂的叫声进行长距离联络,灵活的耳廓有助于在嘈杂的环境中捕捉同伴的特定频率呼叫。
然而,在大型类人猿中,社交信号更多依赖于面部表情、肢体语言以及近距离的声音交流。由于个体间距离较近,声源定位的需求降低,耳廓的可动性逐渐退化为次要特征。此外,大型灵长类的耳部形态更多受到视觉展示的影响,耳部的颜色或形状可能在求偶或威慑中发挥作用,而非主要用于听觉定位。这种从听觉主导到视觉与触觉综合互动的转变,进一步削弱了耳廓可动性的演化优势,使得固定且僵硬的耳廓在大型物种中成为常态。
跨物种比较与演化轨迹的综合审视
通过对现存灵长类物种的系统比较,可以梳理出台前清晰的演化轨迹。从原猴亚目到简鼻亚目,耳廓的形态变化呈现出从多样化到趋同的趋势。原猴类如鼠狐猴,拥有巨大的、可独立转动的耳廓,适应其夜行性及小型化生活方式。随着灵长类向日间活动及树栖生活的进一步适应,体型普遍增大,耳廓的可动性随之减弱。这一过程并非线性退化,而是功能替代的结果,即听觉定位功能部分转移至前庭系统或大脑皮层的空间处理机制。
现代生物学研究通过解剖学分析与声学测量,证实了耳廓可动性与体型之间存在着严密的负相关关系。这一关联不仅解释了为何小型灵长类普遍保留可动耳廓,也揭示了大型灵长类听觉系统演化的内在逻辑。耳廓的形态与功能始终受制于生物体的整体生理结构与环境压力,任何单一特征的演化都是多重因素共同作用的结果。理解这一关联,有助于更深入地认识灵长类动物在适应不同生态位过程中,感官系统所做出的精细化调整。